
 Santé
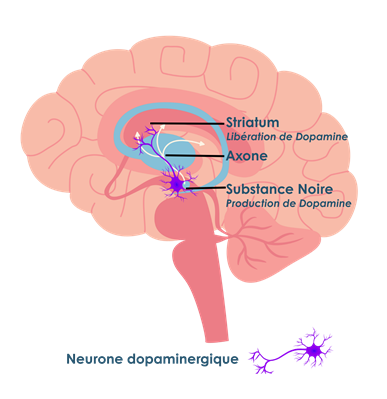
La maladie de Parkinson est une maladie neurodégénérative qui affecte 1 à 2% des personnes de plus de 65 ans. Elle est caractérisée par la perte progressive des neurones dopaminergiques (produisant de la dopamine) de la substance noire, une zone située profondément dans le cerveau, au dessus du bulbe rachidien. La dégénerescence des neurones dopaminergiques est causée par la formation d'agrégats protéiques d'α-synucléine nommés corps de Lewy [1, 2]. Des altérations de l'axe intestin-cerveau suggèrent qu'une dysbiose, c'est-à-dire une déséquilibre fonctionnel et structural de la population microbienne colonisant le tube digestif, intervient dans l'émergence de la maladie de Parkinson [1, 3].
 Source : https://www.franceparkinson.fr/
Une étude méta-analytique a évalué le profil métagénomique fécal de 94 patients atteints de la maladie de Parkinson et de 73 sujets témoins sains. Cette étude a été réalisée avec données d'individus vivant au Japon, intégrés à cinq jeux de données issus d'Allemagne, de Chine, des États-Unis et de Taïwan [4]. Le séquençage métagénomique global de type shotgun (technique de séquençage direct de l'ensemble de l'ADN extrait sans cible spécifique) a montré une augmentation de l'α-diversité (indice mesurant la richesse et l'équitabilité des espèces au sein d'un même échantillon) chez les individus malades comparativement aux témoins [4].
L'analyse taxonomique met en évidence des modifications quantitatives significatives :
L'analyse fonctionnelle des gènes bactériens indique une diminution des séquences codant les voies de biosynthèse de la riboflavine (vitamine B2) et de la biotine (vitamine B8) chez les sujets atteints de la maladie de Parkinson [4]. De plus, 5 catégories sur les 6 répertoriées pour les enzymes actives sur les glucides (CAZymes, pour Carbohydrate-Active EnZymes) présentent une baisse d'abondance génique mesurée chez les patients par rapport au groupe témoin [4].
Pour doser les molécules issues du métabolisme bactérien, deux techniques biochimiques ont été appliquées aux échantillons fécaux : la chromatographie en phase gazeuse couplée à la spectrométrie de masse (GC-MS) pour le dosage des acides gras à chaîne courte (AGCC, métabolites issus de la fermentation des fibres), et la chromatographie liquide couplée à la spectrométrie de masse en tandem (LC-MS/MS) pour la quantification des polyamines (composés azotés régulant la croissance cellulaire) [4]. Les mesures révèlent une réduction statistiquement significative des concentrations fécales d'AGCC et de polyamines chez les patients parkinsoniens en comparaison avec les témoins [4].
 Source : Le Parisien
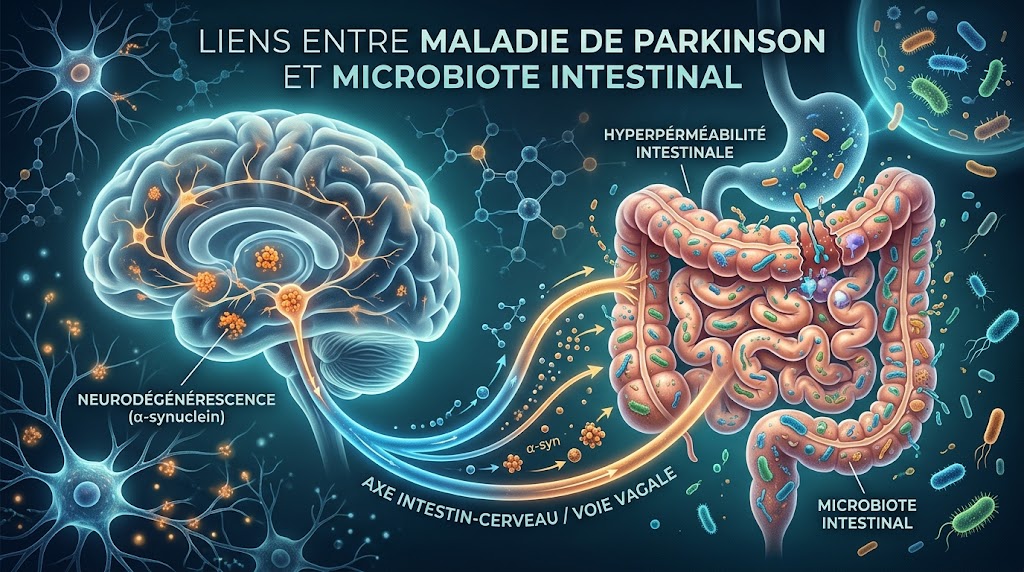
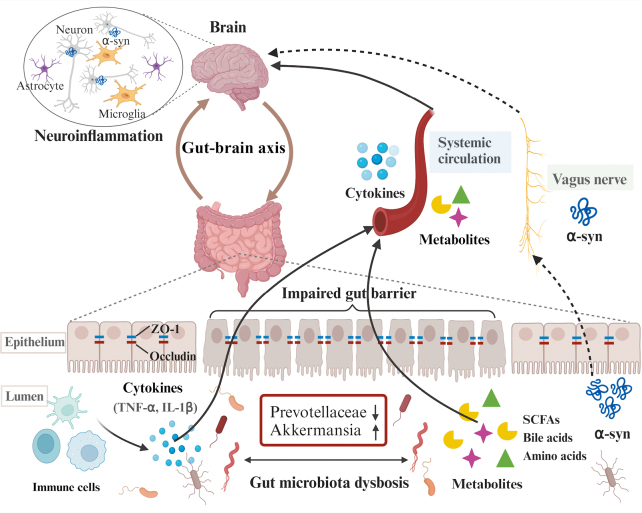
La diminution des AGCC et des polyamines affaiblit le maintien du mucus épithélial intestinal [4]. La dégradation de cette barrière physique permet une exposition directe du plexus nerveux entérique aux facteurs de la lumière du tube digestif. Cet environnement favorise la repliement anormal de la protéine α-synucléine sous forme de fibrilles au niveau des neurones entériques [2, 4].
Selon le modèle de Braak, ces agrégats d'α-synucléine progressent le long du nerf vague (ou nerf parasympathique) par transport axonal rétrograde : c'est un transport vésiculaire qui permet de remonter le long de l'axone. Les agrégats remontent ainsi jusqu'au tronc cérébral et au bulbe rachidien, atteignant ultimement la substance noire [2, 4]. Cette propagation déclenche une réponse neuroinflammatoire systémique et centrale conduisant à la mort neuronale ciblée [1, 2, 3, 5]. L'utilisation de protocoles expérimentaux comme la transplantation de microbiote fécal (TMF, transfert de selles d'un donneur sain vers un receveur) vise à évaluer la réversibilité de ces altérations dans les modèles animaux et cliniques [2].
Source : https://pmc.ncbi.nlm.nih.gov/articles/PMC11771718/
L'étude menée par Zhao et ses collaborateurs a évalué l'action de la TMF chez des souris de lignée C57BL/6 soumises à une intoxication chronique à la roténone, un pesticide inhibiteur du complexe I mitochondrial utilisé pour modéliser la maladie [6]. La roténone induit une perméabilité intestinale et une élévation des taux sanguins de lipopolysaccharide (LPS), une endotoxine composant la membrane externe des bactéries à Gram négatif.
Les analyses par Western blot (une technique visant à identifier les protéines présentes dans un échantillon) révèlent une surexpression du récepteur membranaire de l'immunité innée TLR4 (Toll-like receptor 4), de la protéine adaptatrice MyD88 et du facteur de transcription phosphorylé NF-κB p65 dans le côlon et le cerveau des animaux exposés à la roténone [6]. Par transcription inverse suivie d'une PCR quantitative (RT-qPCR), les concentrations d'ARN messagers des cytokines pro-inflammatoires TNF-α et IL-1β sont mesurées à des niveaux significativement plus élevés que chez les témoins (test de Student, p < 0,01) [1]. Cette cascade inflammatoire s'accompagne d'une réduction de 55 % de l'expression de la tyrosine hydroxylase (TH), enzyme limitante de la synthèse de la dopamine, au niveau du striatum cérébral par rapport au groupe témoin [6].
Après l'administration de la TMF issue de souris saines, le séquençage de l'ARN ribosomique 16S démontre une réversion de la dysbiose intestinale. Les dosages par méthode immuno-enzymatique ELISA montrent une diminution significative de 42 % du LPS circulant par rapport au groupe non traité, p < 0,05 [5]. Parallèlement, l'expression de la tyrosine hydroxylase remonte à 82 % de la valeur observée chez les témoins sains, corrélée à une amélioration de la coordination motrice mesurée lors du test de la tige rotative (rotarod) [6].
L'essai clinique randomisé en double aveugle contre placebo conduit par Cheng et son équipe a quantifié l'efficacité de la TMF chez des patients diagnostiqués avec la maladie de Parkinson [7]. Les sujets ont reçu par voie digestive soit une suspension fécale provenant d'un donneur sain, soit une solution placebo.
L'évaluation repose sur l'échelle clinique MDS-UPDRS (Movement Disorder Society-Unified Parkinson’s Disease Rating Scale). Au terme d'un suivi de 12 semaines, les patients traités par TMF présentent une diminution moyenne de leur score moteur MDS-UPDRS de 5,4 ± 1,8% par rapport à la valeur initiale, contre une diminution non significative de 1,1 ± 1,4% dans le groupe placebo [2]. Les troubles de la motilité intestinale, quantifiés par le score de constipation de Rome IV, affichent également une réduction moyenne de 43 % chez les individus ayant reçu la greffe fécale (p < 0,01 comparativement au placebo) [7]. L'analyse métagénomique des selles confirme la colonisation par des taxons producteurs d'acides gras à chaîne courte (AGCC), corrélée à la réduction des marqueurs inflammatoires plasmatiques.
Ainsi, la compréhension des liens entre les modulations du microbiote et l'émergence de la maladie de Parkinson permettent d'identifier des thérapies restauratives mais aussi d'envisager des stratégies d'anticipation pour retarder ou empêcher l'arrivée de la maladie.
L'image sera générée à partir du contenu de l'article et du titre.
ℹ️ Quota : environ 20 images/jour avec le tier gratuit Gemini.
Génération de l'image…
Image générée :